El ojo: II. Función receptora y nerviosa de la retina.
La retina se compone de 10 capas o estratos celulares quese enumeran de forma secuencial, comenzando por el másexterno (el más alejado del centro del globo ocular):
1. Capa pigmentaria
2. Capa de conos y bastones.
3. Membrana limitante externa.
4. Capa nuclear externa
5. Capa plexiforme externa
6. Capa nuclear interna.
7. Capa plexiforme interna
8. Capa ganglionar
9. Capa de fibras del nervio óptico.
10. Membrana limitante interna.
Cuando la luz atraviesa el sistema ocular de lentes,encuentra primero la membrana limitante interna, las fibras del nervio óptico y la capa de células ganglionares; luego prosigue por las demás capas hasta alcanzar los receptores(conos y bastones). La fóvea es una región especializada, de aproximadamente 1 mm2, situada en el centro de la retina.Dentro del centro de la fóvea existe una zona, de nominada fóvea central, con un diámetro de 0,3 mm; esta es la región donde la agudeza visual alcanza el máximo y la capa de fotorreceptores solo contiene conos. Además, las capas subyacentes de la retina a lo largo de las fibras del nervio óptico y de los vasos sanguíneos se desplazan lateralmente para facilitar el acceso más directo posible a los receptores.
Cada fotorreceptor se compone de:
1) un segmentoexterno
2) un segmento interno
3) una región nuclear
4) el cuerpo o terminal sináptico.
Los receptores se denominan bastones o conos, dependiendo, principalmente, de la forma del segmento externo.

El fotopigmento sensible a la luz rodopsina se localiza en elsegmento externo del bastón, mientras que el del cono con-tiene un material parecido, un pigmento sensible a los colores, la fotopsina. Estos fotopigmentos son proteínas incorporadas aun conjunto apilado de discos membranosos en el segmentoexterno del receptor, que representa un repliegue de la membrana celular externa. Sin embargo, no resulta fácil de reconocer en la porción distal del segmento externo del bastón,donde los discos membranosos se desprenden de manera secundaria y están totalmente contenidos dentro de la membrana limitante de ese segmento.
Los segmentos internos de los bastones y conos son básicamente idénticos y contienen componentes y orgánulos citoplásmicos comunes a otros somas neuronales. Cada núcleo del fotorreceptor se continúa con su propio segmento interno, pero la membrana limitante externa de la retina establece una separación o frontera incompleta entre la capa de los segmentos internos y la capa de los núcleos fotorreceptores (capa nuclear externa). El cuerpo sináptico contiene elementos como mitocondrias y vesículas sinápticas, habituales en las terminaciones axónicas del cerebro. El pigmento negro melanina de la capa de pigmento reduce la reflexión de la luz por el globo ocular y cumple, por tanto, una función parecida al color negro del interior de los fuelles de una cámara. La importancia de este pigmento se reconoce mejor por su ausencia en las personas albinas. Los albinos casi nunca alcanzan una agudeza visual mayor de 20/100 debido a la enorme reflexión que tiene lugar dentro del globo ocular. La capa de pigmento también almacena grandes cantidades de vitamina A, empleadas en la síntesis de los pigmentos visuales. La arteria central de la retina irriga solo las capas más internas (desde los axones de las células ganglionares hasta la capa nuclear interna). Las capas más externas de la retina son perfundidas mediante difusión desde la coroides,tejido muy vascularizado que se sitúa entre la esclerótica y la retina.
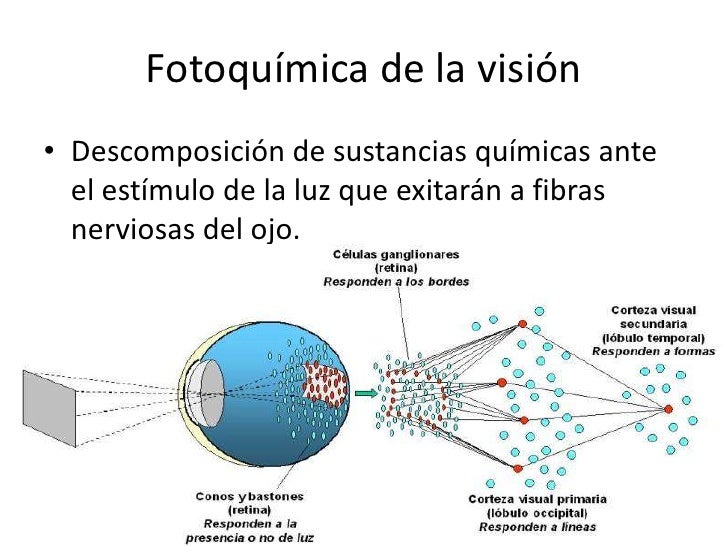
FOTOQUIMICA DE LA VISION.
Ciclo rodopsina-retinal y excitación de los bastones. La rodopsina se descompone por la energía lumínica. El fotopigmento rodopsina de los bastones se concentra en la porción del segmento externo que sobresale hacia la capa pigmentaria. Esta sustancia es una combinación de la proteína escotopsina y del pigmento carotenoide retinal o, más concretamente,11-cis retinal. Cuando la rodopsina absorbe la energía lumínica,el retinal se transforma en su configuración todo-trans y comienzan a separarse los componentes retinal y escotopsina. Tras una serie de reacciones extraordinariamente rápidas, el componente retinal se transforma en lumirrodopsina, metarrodopsina I, metarrodopsina II y, por último, escotopsina; y se escinde el todo-trans retinal. Durante este proceso, se cree que la metarrodopsina II se ocupa de la transmisión de losimpulsos sucesivos por la retina. Regeneración de la rodopsina. En la primera etapa de regeneración de la rodopsina, el todo-trans retinal se convierte en 11-cis retinal, que se combina en seguida con la escotopsina para dar la rodopsina. Existe una segunda vía deformación de la rodopsina basada en la conversión del todo-trans retinal en todo-trans retinol, una forma de vitamina A. El retinol se convierte por vía enzimática en 11-cis retinol y luegoen 11-cis retinal, que puede combinarse con la escotopsinapara dar rodopsina. Si la retina contiene un exceso de retinal,se transforma en vitamina A, disminuyendo así la cantidad total de rodopsina de la retina. Las personas con carencia de vitamina A experimentan ceguera nocturna porque los bastones son los fotorreceptores que más se utilizan en condiciones de iluminación crepuscular y la formación de rodopsina disminuye de forma espectacular por la ausencia de vitamina A. Este trastorno se revierte en 1 h o menos mediante la inyección intravenosa de vitamina A.

Fotoquímica de la visión de los colores por los conos Anteriormente se ha señalado que las sustancias fotosensibles de los conos poseen casi exactamente la misma composición química que la rodopsina de los bastones. La única diferencia radica en que sus porciones proteicas u opsinas (llamadas fotopsinas en los conos) son un poco distintas de la escotopsina de los bastones. La porción de todos los pigmentos visuales correspondiente al retinal es absolutamente idéntica en los conos y en los bastones. Por tanto, los pigmentos sensibles al color de los conos consisten en combinaciones de retinal y fotopsinas. En la explicación sobre la visión de los colores que se ofrece más adelante en este capítulo, quedará patente que solo uno de los tres tipos de pigmentos destinados a este fin está presente en cualquiera de los diferentes conos, lo que les concede una sensibilidad selectiva a los diversos colores: azul, verde o rojo. Estos pigmentos para el color se llaman, respectivamente, pigmento sensible al azul, pigmento sensible al verde y pigmento sensible al rojo. Sus características de absorción en los tres tipos de conos muestran unas absorbencias máximas ante la luz de las longitudes de onda de 445, 535 y 570 nm, respectivamente.
Regulación automática de la sensibilidad retiniana: adaptación a la luz y a la oscuridad
Si una persona ha estado expuesta a una luz radiante durante horas, una gran parte de las sustancias fotosensibles en los conos y los bastones habrá quedado reducida a retinal y opsinas. Por añadidura, gran parte del retinal presente en ambos tipos de receptores se habrá convertido en vitamina A. Debido a estos dos efectos, las concentraciones de productos fotosensibles que quedan en los conos y los bastones son considerablemente bajas, y la sensibilidad del ojo a la luz está reducida de forma proporcional. Este proceso se llama adaptación a la luz. Por el contrario, si una persona permanece en la oscuridad durante un período prolongado, el retinal y las opsinas de los conos y los bastones han vuelto a convertirse en los pigmentos sensibles a la luz.

Valores de la adaptación visual a la luz y a la oscuridad Entre los límites de la adaptación máxima a la oscuridad y a la luz, el ojo puede modificar su sensibilidad lumínica hasta de 500.000 a 1 millón de veces, con una corrección automática ante los cambios de iluminación. Dado que la recepción de las imágenes por la retina requiere la detección de puntos luminosos y oscuros en la figura, resulta fundamental que su sensibilidad esté siempre ajustada de modo que los receptores respondan a las zonas más luminosas, pero no a las más oscuras. Un ejemplo de mala regulación de la adaptación retiniana que puede citarse ocurre cuando una persona sale de un cine y recibe la luz radiante del sol. En ese instante, incluso los puntos oscuros de las imágenes parecen extraordinariamente brillantes y, como consecuencia, la imagen visual en su integridad está decolorada, con un contraste escaso entre sus diferentes partes. Esta visión deficiente se prolonga hasta que la retina se haya adaptado lo suficiente para que las áreas más oscuras de la imagen dejen de estimular en exceso a los receptores.
Percepción de la luz blanca
Una estimulación aproximadamente equivalente de los conos rojo, verde y azul da lugar a la sensación visual del blanco. Con todo, la luz no tiene una sola longitud de onda que corresponda al blanco; en su lugar, este color es una combinación de todas las longitudes del espectro. Además, la percepción del blanco puede lograrse mediante la estimulación de la retina con la combinación oportuna tan solo de tres colores escogidos que activen los tipos de conos respectivos más o menos por igual.
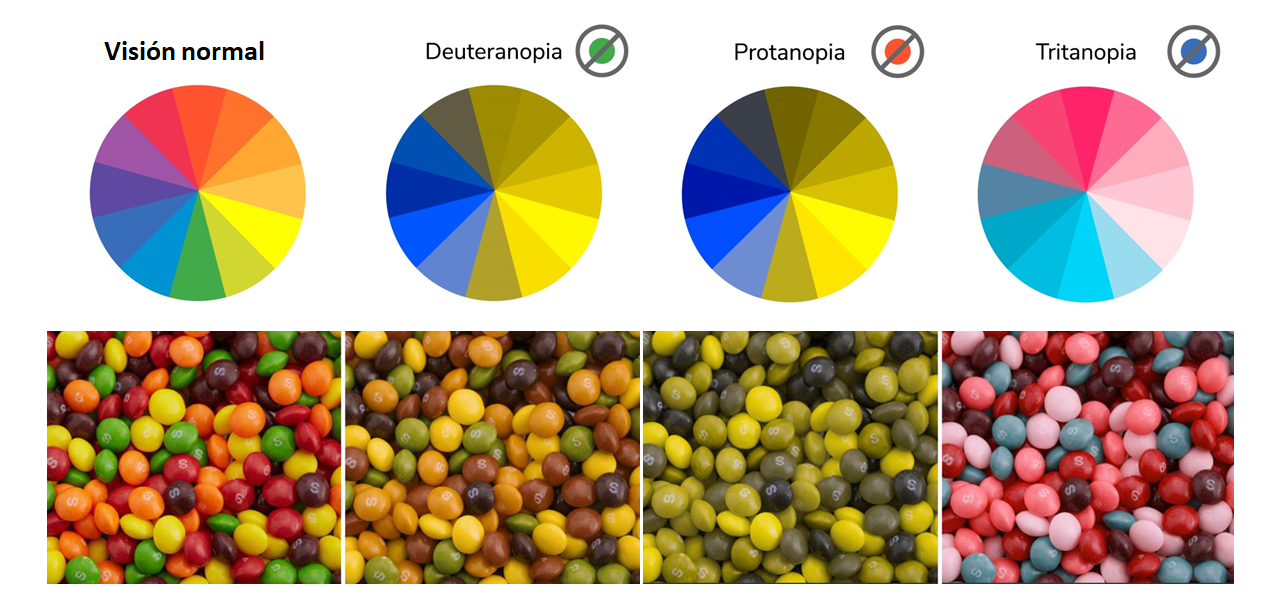
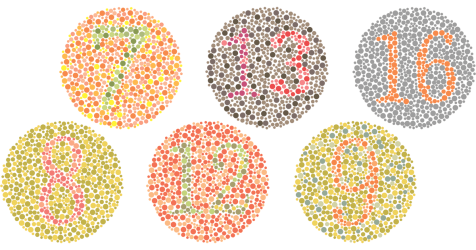
Daltonismo
Daltonismo rojo-verde
El daltonismo rojo-verde es un trastorno genético que aparece casi exclusivamente en los varones. Es decir, los genes del cromosoma X femenino codifican para los conos respectivos. Con todo, el daltonismo casi nunca ocurre en las mujeres porque uno de los dos cromosomas X casi siempre posee como mínimo un gen normal para cada tipo de cono. Dado que el varón solo tiene un cromosoma X, la ausencia de un gen puede desembocar en un daltonismo. Como el cromosoma X del varón siempre se hereda de la madre, nunca del padre, esta alteración se transmite de la madre al hijo, y se dice que la madre es una portadora del daltonismo; aproximadamente el 8% de las mujeres son portadoras de daltonismo.
Debilidad para el azul
Solo rara vez faltan los conos azules, aunque en ocasiones están infrarrepresentados, lo que constituye un trastorno genéticamente hereditario que da origen al fenómeno llamado debilidad para el azul.
Función nerviosa de la retina
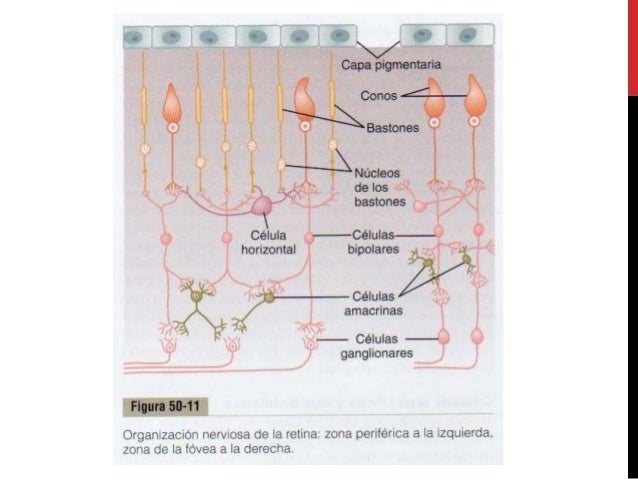
Los diversos tipos neuronales son los siguientes:
1. Los fotorreceptores, los conos y los bastones, que transmiten las señales hacia la capa plexiforme externa, donde hacen sinapsis con las células bipolares y horizontales.
2. Las células horizontales, que transmiten las señales en sentido horizontal por la capa plexiforme externa desde los conos y los bastones hasta las células bipolares.
3. Las células bipolares, que transmiten las señales en sentido vertical desde los conos, los bastones y las células horizontales hacia la capa plexiforme interna, donde hacen sinapsis con las células ganglionares y amacrinas. 4. Las células amacrinas, que transmiten las señales en dos direcciones, directamente desde las células bipolares hasta las células ganglionares, u horizontalmente en el seno de la capa plexiforme interna desde los axones de las células bipolares hasta las dendritas de las células ganglionares o hasta otras células amacrinas.
5. Las células ganglionares, que transmiten las señales de salida desde la retina hacia el cerebro a través del nervio óptico.
La transmisión de la mayoría de los impulsos en las neuronas de la retina se produce por conducción electrotónica, no por potenciales de acción
Las únicas neuronas de la retina que siempre transmiten señales visuales por medio de potenciales de acción son las células ganglionares, que las envían hasta el cerebro a través del nervio óptico. A veces, también se han registrado potenciales de acción en las células amacrinas, aunque su importancia sea dudosa. Por lo demás, todas las neuronas de la retina envían su información visual mediante conducción electrotónica, que puede explicarse del modo siguiente: la conducción electrotónica significa el flujo directo de una corriente eléctrica, y no de unos potenciales de acción, a lo largo del citoplasma neuronal y los axones nerviosos desde el punto de excitación hasta las sinapsis de salida. Incluso en los conos y los bastones, la conducción desde sus segmentos externos, donde se generan las señales visuales, hasta los cuerpos sinápticos es de tipo electrotónico. Es decir, cuando se produce la hiperpolarización como respuesta a la luz en el segmento externo de un cono o de un bastón, se transmite casi con la misma magnitud mediante un flujo de corriente eléctrica directo por el citoplasma hasta el cuerpo sináptico, sin que haga falta ningún potencial de acción. Entonces, cuando el transmisor de un cono o de un bastón estimula una célula bipolar u horizontal, una vez más la señal avanza desde la entrada hasta la salida por un flujo directo de corriente eléctrica, y no por potenciales de acción. La importancia de la transmisión electrotónica radica en que permite una conducción escalonada de la potencia de la señal. Por tanto, en el caso de los conos y los bastones, la magnitud del impulso de salida hiperpolarizante está directamente relacionada con la intensidad de la iluminación; no queda reducida a todo o nada, como sucedería con cada potencial de acción aislado.
Células bipolares despolarizantes e hiperpolarizantes Dos son los tipos de células bipolares que suministran señales excitadoras e inhibidoras opuestas en la vía visual: 1) la célula bipolar despolarizante, y 2) la célula bipolar hiperpolarizante. Es decir, algunas células bipolares se despolarizan con la excitación de los conos y los bastones, y otras se hiperpolarizan. Existen dos posibles explicaciones para esta diferencia. La primera señala que estas células bipolares pertenecen a dos clases totalmente distintas, de manera que una responde con una despolarización frente a la liberación del neurotransmisor glutamato por parte de los conos y los bastones, y la otra lo hace con una hiperpolarización. La opción alternativa defiende que una de las células bipolares recibe una excitación directa procedente de los conos y los bastones, mientras que el impulso llega a la otra por un camino indirecto a través de una célula horizontal. Dado que esta última es una célula inhibidora, se invertiría la polaridad de la respuesta eléctrica. Sea cual sea el mecanismo que siguen los dos tipos de respuestas, la importancia de este fenómeno
reside en que permite que la mitad de las células bipolares envíe señales positivas y la otra mitad las envíe negativas.
Células amacrinas y sus funciones
Se han identificado unas 30 clases de células amacrinas por medios morfológicos e histoquímicos.
Ya se ha podido caracterizar la función más o menos de una docena de ellas y todas son diferentes.
• Un tipo de célula amacrina forma parte de la vía directa para la visión de los bastones, a saber, la compuesta por el bastón, las células bipolares, las células amacrinas y las células ganglionares.
• Otro tipo de célula amacrina responde potentemente cuando comienza una señal visual continua, pero su actividad se extingue con rapidez.
• Otras células amacrinas presentan una respuesta enérgica al desaparecer las señales visuales, pero, una vez más, su descarga cesa a gran velocidad.
• Otro tipo responde cuando se enciende o se apaga una luz, para indicar simplemente un cambio de iluminación, sin tener en cuenta su sentido.
• Otro tipo más responde al movimiento de un punto a través de la retina en una dirección específica; por tanto, se dice que estas células amacrinas son sensibles a la dirección.
Así pues, y en un cierto sentido, muchas de las células amacrinas o su mayoría son interneuronas que sirven para analizar las señales visuales antes de que lleguen a abandonar la retina.
Células ganglionares de la retina y sus campos respectivos
Células W, X e Y
Los estudios iniciales realizados en gatos describieron tres tipos distintos de células ganglionares de la retina, que se designan como células W, X e Y, basándose en sus diferencias en estructura y en función. Las células W envían señales por sus fibras en el nervio óptico a una velocidad lenta y reciben el mayor componente de su excitación desde los bastones, transmitida a través de pequeñas células bipolares y células amacrinas. Tienen campos amplios en la retina periférica, son sensibles para la detección del movimiento direccional en el campo de visión y, probablemente tienen importancia para la visión de los bastones en condiciones de oscuridad. Las células X poseen campos pequeños porque sus dendritas no ocupan una gran extensión en la retina, y así sus señales representan lugares separados de la retina y transmiten los detalles finos de las imágenes visuales. Asimismo, como cada célula X recibe conexiones al menos desde un cono, su actividad probablemente es responsable de la visión de los colores. Las células Y son las más grandes de todas y envían impulsos hacia el cerebro a 50 m/s o más rápidamente. Dado que poseen amplios campos dendríticos, las señales son captadas por estas células a partir de extensas zonas retinianas. Las células Y responden a las modificaciones rápidas de las imágenes visuales y comunican al sistema nervioso central la irrupción de un fenómeno nuevo en el campo visual de un modo casi instantáneo, pero no especifican con gran precisión su lugar de aparición, aparte de ofrecer indicios para que los ojos se desplacen hacia el estímulo excitador.
Células P y M
En los primates se utiliza una clasificación diferente de células ganglionares de la retina, y se han descrito hasta 20 tipos de estas células, cada uno de los cuales responde a una característica diferente de la escena visual. Algunas células responden mejor a direcciones específicas de movimiento u orientaciones, mientras que otras lo hacen a detalles finos, aumento o disminución de la luz o determinados colores. Las dos clases generales de células ganglionares de la retina más ampliamente estudiadas en los primates, incluidos los seres humanos, se designan como células magnocelulares (M) y parvocelulares (P). Las células P (también conocidas como células β o, en la retina central, como células ganglionares enanas) se proyectan hacia la capa de células parvocelulares (pequeñas) del núcleo geniculado lateral del tálamo. Las células M (conocidas también como células α o parasol) se proyectan a la capa magnocelular (células grandes) del núcleo geniculado lateral, que, a su vez, retransmite la información desde la cintilla óptica a la corteza visual, como se expone en el capítulo 52. Las diferencias principales entre las células P y M son las siguientes: 1. Los campos receptores de células P son mucho más pequeños que los de las células M. 2. Los axones de las células P conducen impulsos con mucha mayor lentitud que las células M.
- Las respuestas de las células P a los estímulos, especialmente a los estímulos de colores, pueden ser sostenidas, mientras que las respuestas de las células M son mucho más transitorias. 4. Las células P son, en general, sensibles al color de un estímulo, mientras que las células M no lo son. 5. Las células M son mucho más sensibles que las P a estímulos en blanco y negro de bajo contraste. Las funciones principales de las células M y P son evidentes a partir de sus diferencias: las células P son muy sensibles a señales visuales que se relacionan con detalles finos y a diferentes colores, pero relativamente insensibles a señales de bajo contraste, mientras que las células M son muy sensibles a los estímulos de bajo contraste y a señales visuales en rápido movimiento. Se ha descrito un tercer tipo de célula ganglionar de la retina fotosensible que contiene su propio fotopigmento, la melanopsina. Se sabe mucho menos de este tipo celular, aunque estas células parecen enviar señales principalmente a zonas no visuales del encéfalo, en concreto el núcleo supraquiasmático del hipotálamo, el principal marcapasos circadiano. Supuestamente, estas señales ayudan a controlar el ritmo circadiano que sincroniza los cambios fisiológicos con la noche y el día. Excitación de las células ganglionares Potenciales de acción continuos y espontáneos en las células ganglionares Las células ganglionares son el punto de origen de las fibras largas que llegan al cerebro formando el nervio óptico. Dada la distancia que han de recorrer, el método de conducción electrotónico empleado por los conos, los bastones y las células bipolares en el interior de la retina deja de ser rentable; por tanto, las células ganglionares pasan a transmitir sus impulsos mediante potenciales de acción repetidos. Además, incluso cuando no están estimuladas, envían impulsos continuos a una frecuencia que oscila entre 5 y 40 por segundo. A su vez, las señales visuales quedan superpuestas sobre esta actividad de fondo de las células ganglionares.
Transmisión de las señales de color por parte de las células ganglionares
Una sola célula ganglionar puede ser estimulada por varios conos o únicamente por unos pocos. Cuando los tres tipos de conos, rojo, azul y verde, activan la misma célula ganglionar, la señal transmitida por ella es idéntica ante cualquier color del espectro. Por tanto, este elemento no cumple ninguna función en la detección de los diversos colores. Más bien, se trata de una señal «blanca». En cambio, algunas células ganglionares reciben la excitación de un tipo de cono de un solo color, pero también la inhibición de un segundo tipo. Por ejemplo, este mecanismo sucede a menudo para los conos rojo y verde: el rojo provoca la excitación y el verde la inhibición o viceversa. Esta misma clase de efecto recíproco ocurre entre los conos azules por un lado y una combinación de los conos rojos y verdes (que se excitan con el amarillo) por el otro, lo que otorga una relación recíproca de excitación-inhibición entre los colores azul y amarillo. El mecanismo de este efecto opuesto producido por los colores es el siguiente: un tipo de cono de color excita la célula ganglionar por la vía excitadora directa a través de una célula bipolar despolarizante, mientras que el otro tipo de color la inhibe a través de la vía inhibidora indirecta mediante una célula bipolar hiperpolarizante. La importancia de estos mecanismos de contraste del color estriba en que representan un medio por el que la retina comienza a distinguir los colores. Así pues, cada tipo de célula ganglionar para el contraste de colores queda excitado por un color pero inhibido por el color «contrario». Por tanto, el análisis del color empieza en la retina y no supone una función íntegra del cerebro.

 ANA SEISI TORRES VAZQUEZ
